
RenMabTM小鼠的免疫系統發育
人源化抗體鼠的主要用途是用在新藥研發上的全人源抗體發現,如果RenMabTM鼠的免疫系統發育缺陷,不能正常地產生抗體,或者是不能以正常的方式產生抗體(比如AlivaMab鼠),那就失去了其存在的意義。
RenMabTM鼠目前來看是個六能鼠,能吃、能喝、能拉、能睡、能生和能產生抗體,在小鼠的日常維護中不需要特殊條件/照顧,從側面證明了RenMabTM鼠發育正常。
從科學數據上來看呢?
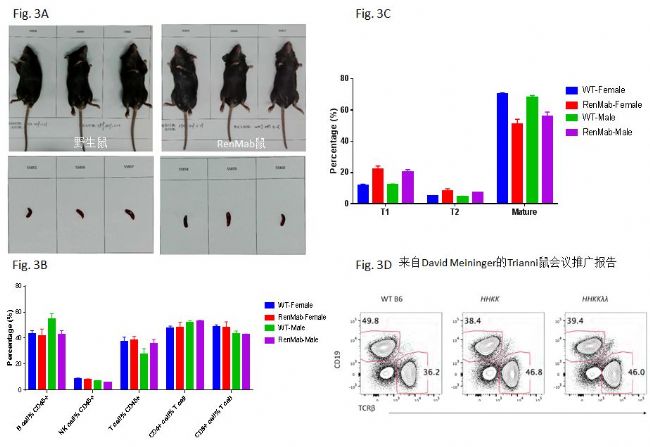
首先從外觀上(Fig. 3A),RenMabTM鼠體重(上)以及脾臟形態大小(下)無顯著性差異(n=3)。其它器官比如心臟、胸腺、肝臟、肺臟和腎臟等也無顯著性差異(數據未顯示)。這說明RenMabTM鼠和野生鼠在器官發育上完全一致。小鼠B細胞在骨髓中發育成熟,然后離開進入循環系統,定居于脾臟和淋巴結。下面以脾臟中的免疫細胞的類型、脾臟中T1,T2和成熟B細胞的比例等來判斷RenMabTM鼠的B細胞發育情況。從Fig. 3B來看,無論是在RenMabTM雌鼠中還是雄鼠中,在CD45+的細胞群體中,B細胞,NK細胞和T細胞的比例基本相同(n=3)。在T細胞中,CD4+的T細胞 和CD8+的T細胞的比例,RenMabTM鼠和野生鼠沒發現顯著性差異。
進一步分析脾臟中B細胞發育的各個階段,在RenMabTM鼠中,無論是雄鼠還是雌鼠,T1 B細胞(B220+IgM+IgD-)和T2 B細胞(B220+IgM+IgD+)的比例相對于野生鼠都有不同程度的升高,與此同時,成熟B細胞(B220+IgMlowIgD+)在B220+細胞中的比例也有相應下降(Fig. 3C)。這說明在脾臟中B細胞的發育過程中存在T1/T2到成熟B細胞的阻滯。這個現象一點都不驚訝,已有文獻證明當參與B細胞受體信號傳導的遺傳因素缺失時,會導致脾臟中T1/T2到成熟B細胞的發育阻滯(Loder F., wt al, 1999 J. Exp. Med.)。RenMabTM鼠抗體V區的原位替換可能導致了某些遺傳因素的缺失并且這個缺失不能被人相應位置的遺傳因素所補償,最終導致了T1/T2到成熟B細胞的發育阻滯。這種B細胞發育中的阻滯現象不會影響抗體生成,因為類似的現象在其它人源化抗體鼠比如Trianni鼠、再生元的VelocImmune鼠、OmniRat鼠、AlivaMab鼠和KyMab鼠中也存在(Fig.
3D)(McDonald L.E. et al, 2014
PNAS; Murphy A.J. et al, 2014 PNAS;Lee E.C., 2014 Nat. Biotechol;Joyce
C. et al, 2019 BioRxiv; Asensio M. et al, 2019, mAbs; Meining D. et al,
Trianni conference presentation)。在Fig. 3D中,外周血中CD19+細胞的比例在野生鼠中是49.8%,但在Trianni kappa輕鏈鼠中的比例只有38.4%,這也是T1/T2到成熟B細胞的發育阻滯的結果。尤其令人感興趣的是,RenMabTM鼠和Trianni鼠都選用了類似的原位替換策略,這說明導致人源化抗體鼠T1/T2到成熟B細胞的發育阻滯的遺傳因素就在被替換的鼠抗體V區中,并且很可能由于種屬差別,人的參與B細胞受體信號傳導的遺傳因素的插入并不能提供相應的代償。另外一種可能是小鼠中參與B細胞受體信號傳導的遺傳因素仍然存在,但是由于人/鼠嵌合BCR和小鼠野生BCR信號傳導機制的細微差別(Mestas J. et al, 2004 J. Immunol.),導致了表達某些人BCR的鼠B細胞發育阻滯。從公眾數據庫中現有的人源化抗體鼠的多變區基因使用頻率來看,后一種可能性不大。
正如前面提到的,在各抗體人源化鼠中觀察到的B細胞發育阻滯并不影響人源化抗體鼠中抗體多樣性的生成以及所產生抗體的成藥性,免疫治療中很火的O藥就是一個例子。所以說,我們看到的B細胞發育阻滯現象會是一個很好的科學研究方向,但對于人源化抗體鼠做為抗體發現的工具來說卻是無傷大雅的。那有同學會問,既然RenMabTM鼠存在輕微的B細胞發育阻滯現象,那我怎么知道RenMabTM鼠中抗體多樣性生成中V(D)J重排機制沒有受到影響呢?
RenMabTM鼠的抗體V(D)J重組機制和人的原生調控序列兼容嗎?
抗體多樣性生成中重鏈的V(D)J重排和輕鏈的V-J重排發生在骨髓中,B細胞發育的Pro-B和Pre-B階段,那讓我們把目光從脾臟拉回到骨髓中的抗體多樣性生成。回答上面兩位同學的問題,一是RenMabTM鼠的抗體V(D)J重組機制和人的原生調控序列兼容嗎?二是B細胞發育的阻滯會不會造成RenMabTM鼠中抗體多樣性生成中V(D)J重排機制的異常?回答這兩個問題最好的辦法是用二代測序的方法去解讀未經免疫的RenMabTM鼠中的抗體多變區基因使用頻率。大家都知道編碼重鏈可變區的胚系基因分為三個基因家族:VH,DH和JH。其中VH有44種,DH有28種,JH有6種。當發生V(D)J重排的時候,B細胞分別選用一個VH、DH和JH基因片段組成重鏈CDR3,所以,重鏈V(D)J重排至少有44*28*6種可能,再加上重輕鏈配對的可能、V-D和D-J結合區的突變以及抗體親和力成熟過程中的體細胞高頻突變,這共同形成了抗體生成中的多樣性。
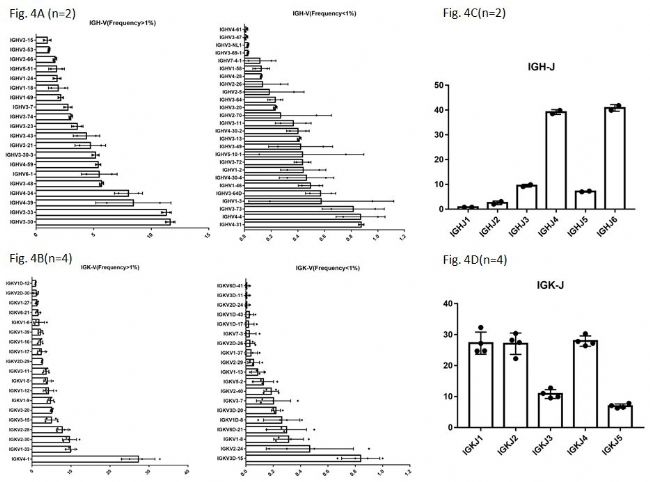
從Fig. 4A中可以看到,從兩只RenMabTM鼠中,發現了46種不同的VH基因(包括兩種VH假基因)。VH假基因在人外周血PBMC的免疫組庫中經常被檢測到,其在抗體多樣性生成中的具體用途與意義不明。在RenMabTM鼠的構建中,是用人的全區段V區原位替換了鼠源的V區,兩種VH假基因的發現,從另一個側面也說明了被構建到RenMabTM鼠中的人全區段V區能夠正常被鼠的V(D)J重排機制所使用。在人外周血PBMC中,通常情況下健康人的免疫組庫中~70%的VH是VH3和VH4。從Fig. 4A中可以看到,RenMabTM鼠中VH3和VH4基因家族的使用頻率和人外周血中是非常類似的。同樣的,在兩只鼠中我們觀測到至少25種不同的DH基因,在四只鼠中檢測到38種不同的VK基因(Fig.
4B)。所有的人JH和JK基因家族都被觀測到(Fig. 4C, Fig. 4D),并且人JH/JK基因在RenMabTM鼠中的使用頻率與人外周血PBMC中的使用頻率非常類似。請小伙伴們注意的是,圖4中V基因使用頻率的數據的誤差棒比較大一些,這是由于RenMabTM鼠個體之間的差異造成的。類似的個體間的差異在人體中也被經常觀測到。從抗體發現的角度,這種個體之間的差異是個有利因素,因為不同的RenMabTM鼠可能會利用不同的V(D)J重排組合,從而增加了抗體生成的多樣性。
有同學會問,你VK基因使用頻率中,VK4-1稍微有點高呀?這個現象在再生元的Veloci鼠中也存在(感興趣的自己去讀再生元的ZL)。在野生鼠中,科學家發現重鏈V(D)J重排或者是輕鏈V-J重排的時候,野生小鼠的V(D)J重排機制會優先選用最近的VH或者是VK(Brennecke A. et al, 2018 Front. Immunol.)。而在RenMabTM鼠中,人VK4-1恰恰是離JK基因最近的。這從一個方面說明,在小鼠V(D)J重排中近水樓臺先得月的機制是存在于被替換V區之外的。在小鼠的免疫應答中,具有長LCDR1的輕鏈基因比如mIGKV1-110或者mIGKV1-117經常被優先使用,做過鼠抗人源化的小伙伴們估計深有體會,通常的策略基于人鼠抗體結構同源模擬是使用人VK2基因家族比如VK2-28或者是VK2-30做人源化,因為VK2輕鏈抗體可以容納長鼠源的LCDR1,實際上這是個很壞的選擇,要想知道這種情況下什么輕鏈基因最好?
為什么突然談到這一點?有心的小伙伴請去讀基因泰克最近十年的ZL。
有同學說,這數據只說明了RenMabTM鼠中存在所放進去的V區基因呀,你怎么證明重鏈確實發生了V(D)J重排并且輕鏈發生了V-J重排呢?為回答這個問題,請看下面的數據。
Fig. 5A是對未經免疫的RenMabTM鼠中抗體重鏈的CDR3長度分布做了統計。眾所周知的是,野生型小鼠的抗體重鏈CDR3長度分布的峰值在11-12氨基酸,而人外周血PBMC中抗體重鏈CDR3長度分布的中位值在14.2左右。Fig. 5A說明RenMabTM鼠中抗體重鏈的CDR3長度分布和人外周血PBMC中是非常類似的。更進一步看RenMabTM鼠中抗體重鏈的CDR3氨基酸組成分析,我們選用了一組14氨基酸長度的抗體重鏈基因進行分析。從Fig. 5B可以看出,RenMabTM鼠中抗體重鏈的CDR3氨基酸組成和人外周血PBMC中是高度相似的。主要講以下幾點:
(1)首先,在IMGT107位置,已經有很多研究證明在人外周血PBMC中此位置氨基酸使用偏向于天冬氨酸D、谷氨酸E和甘氨酸G。從圖中我們可以看到,天冬氨酸D、谷氨酸E和甘氨酸G在此位置的使用總頻率已經達到60%左右。
(2)其次,最近多個對人外周血PBMC中免疫組庫二代測序的分析表明,隨著重鏈CDR3長度增加,使用JH6的頻率也增加,這是因為JH6是人JH基因家族中最長的。JH6中富含酪氨酸Y,所以,造成的結果就是隨著重鏈CDR3長度增加,酪氨酸Y的使用頻率也增加。Fig.
5B底部柱狀熱圖的紫色部分是酪氨酸Y,大家可以自行做個判斷,RenMabTM鼠在此特征上是不是與人高度一致。
(3)野生鼠重鏈CDR3中是不存在二硫鍵的,因為野生小鼠的DH基因不含有半胱氨酸的。在人、牛、鯊魚等物種中,二硫鍵的形成是重鏈CDR3多樣性形成的一個重要機制。在鼠中,這種機制是不存在的。在RenMabTM鼠中,因為人源DH2基因家族的引入,在重鏈CDR3氨基酸組成中出現了半胱氨酸C。半胱氨酸C通常是以成對的形式出現,比如CXXC或者CXXXXC。
(4)如果對野生小鼠的重鏈CDR3氨基酸組成做個總分析,你會發現野生小鼠的重鏈CDR3氨基酸組成中甘氨酸G和絲氨酸S的比例很高,那是因為野生小鼠DH基因中富含甘氨酸G和絲氨酸S。在人外周血PBMC的重鏈CDR3氨基酸組成中,甘氨酸G、天冬氨酸D和酪氨酸Y的使用頻率相對較高,在此背景下,請小伙伴們看氨基酸組成熱圖自行判斷RenMabTM鼠生成抗體的質量。
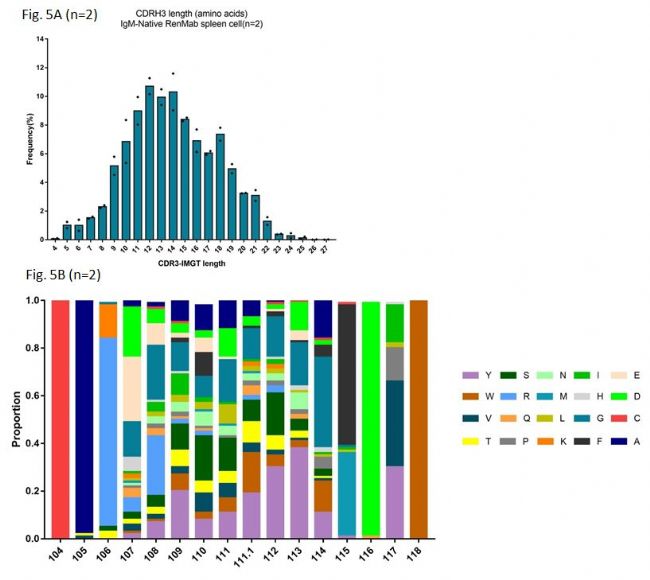
圖4和圖5應該解決了同學們關于RenMabTM鼠中是否能夠利用人抗體的V區基因產生可變區全人源抗體的疑問。話不多說,給出示兩個RenMabTM鼠抗體發現實例:
和野生鼠一樣,RenMabTM鼠能產生強免疫應答
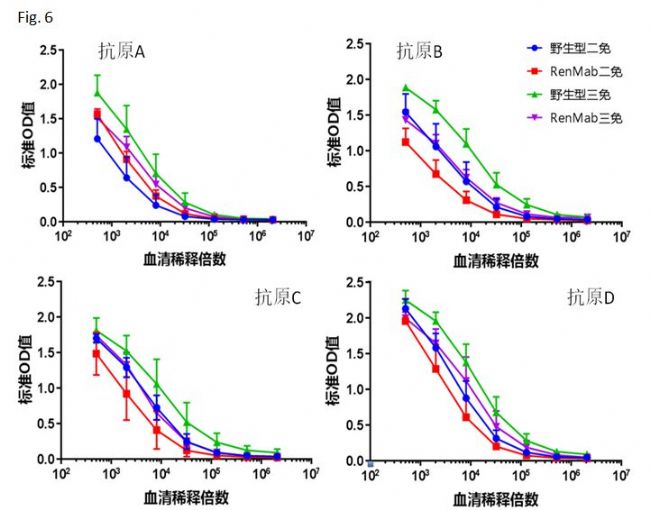
Fig. 6中顯示了用四種不同種類的抗原免疫野生鼠和RenMabTM鼠的抗體滴度效價檢測結果。這個試驗使用了經典的“初始免疫-加強免疫”的免疫策略。從抗體滴度檢測結果來看,四組RenMabTM鼠都針對相應的抗原產生了強免疫應答。相對于野生鼠,RenMabTM鼠抗原特異性的抗體滴度稍微弱一些,但是不會對抗體發現造成決定性的影響。如果您了解Trianni鼠的相應數據(Trianni鼠比野生鼠免疫后抗體滴度低五倍),我想您睡覺都會笑醒。講到這里,RenMabTM鼠這座礦到底是貧礦還是富礦小伙伴們心里都有數了。
百奧賽圖最近引入了美國Berkeley Lights公司的Beacon單細胞光導篩選平臺,結合RenMabTM鼠,全人源抗體發現的進程會大大縮短。Beacon單細胞光導篩選平臺結合體外噬菌體展示技術篩選RenMabTM鼠免疫文庫會確保整個免疫組庫中所有抗原特異性的抗體都被一網打盡。此外,RenMabTM鼠的兄弟:共同輕鏈鼠RenLite已經上線,VH納米鼠RenNano也很快會亮相。百奧賽圖RenMabTM鼠、RenLiteTM鼠和RenNanoTM鼠三兄弟會滿足新藥研發的各種需求,不僅僅是傳統意義上的單克隆抗體,而且是單價雙特異性抗體。VH納米鼠RenNanoTM會使得新藥研發更具有穿透力,使得大分子藥滲透到實體瘤的內部或者是穿過血腦屏障成為可能。
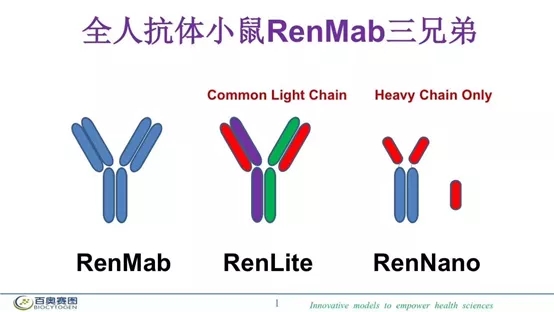
也就是說,礦有了,礦脈找到了,最先進的挖礦工具和理念具備了。下一步,您說呢?還等什么,趕快收拾鋪蓋卷過來一起來百奧賽圖挖礦啊,再晚了鉆石開采權就沒了。