1材料與方法
1.1 試驗設計
選用20日齡黃腳麻雞180只,將肉雞分為4組,每組5個重復,每個重復9只雞,試驗前稱重。試驗組1為對照組(基礎飼糧中添加10%菌柄),試驗組2為基礎飼糧中添加10%普通發酵飼料(僅添加益生菌劑發酵),試驗組3為基礎飼糧中添加10%FAE酶化飼料(僅添加FAE酶化),試驗組4為基礎飼糧中添加10%酶化發酵飼料(添加益生菌劑發酵及FAE酶化)。
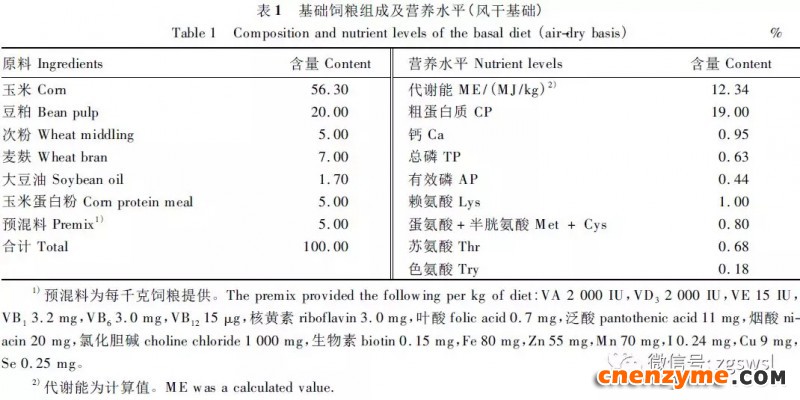
采用地面平養方式飼養,全天光照,每天飼喂3次,自由采食、飲水,定時對雞舍進行消毒清掃(每周2次),試驗時間為25d,按正常肉雞免疫程序進行免疫。肉雞基礎飼糧標準參照NY/T33-2004《雞飼養標準》中肉雞營養需要配制,其組成及營養水平見表1。
1.2 試驗材料
1.2.1 主要器材
反式阿魏酸標準品(美國某公司);阿魏酸甲酯(華僑大學曾慶友老師合成);XOS標準品、木二糖標準品(日本某公司);超濾膜包Vivaflow200(MWCO 30KD)(北京某公司);發酵袋(鄭州某公司)。1100高效液相色譜儀(美國某公司);HPX-42A柱(美國某公司);ODS-C18色譜柱(美國某公司);SP-2102UV紫外可見分光光度計(上海某公司);凝膠成像系統GIS-2008(上海某公司)。
1.2.2 飼料原料
玉米蛋白粉(山東某飼料廠);瓜爾豆粕(廣饒某公司);棕櫚仁粕(大連某公司);預混料(廈門某公司);益生菌劑(1.0×10¹⁰CFU/g)(山東某公司);杏鮑菇菌柄(福建某公司)。
1.2.3 雞苗
黃腳麻雞(廈門某種禽廠)。
1.2.4 試驗地點和時間
廈門市集美區仙靈旗農莊,試驗時間為2013年4-5月。
1.3 飼料發酵方法
1.3.1 FAE粗酶液的制備
1.3.1.1 菌種
黑曲霉,實驗室自行篩選并保藏。
1.3.1.2 培養基成分
種子培養基:PDA培養基,36℃,200r/min培養2d。發酵培養基:麥糟及麥麩干燥粉碎過100目篩,麥糟∶麥麩=1∶4(m/m)比例加入白瓷盤中并按1∶1.5(m/V)添加營養鹽溶液,混勻,121℃滅菌30min,33℃培養6d。營養鹽溶液:蛋白胨0.2%,酵母粉0.4%,NaH2PO4·2H2O 0.152%,KH2PO4 0.1%,CaCl2 0.03%,MgSO4·7H2O 0.03%,Na2HPO4·12H2O 3.14g,Na2HPO4·2H2O 1.56%。
1.3.1.3 粗酶液的制備
發酵料中加入8倍體積的蒸餾水,33℃,180r/min中抽提2.5h,靜置,用8層紗布過濾,得濾液,再將濾液超濾制備得FAE粗酶液,FAE粗酶液酶活達20U/mL以上。超濾條件為操作溫度20℃、壓力0.1MPa及進料速度200mL/min。
1.3.2 普通發酵飼料及酶化發酵飼料的制備
發酵培養基(以干物質計):菌柄12%,玉米蛋白26%,棕櫚仁粕11%,谷殼粉16%,瓜爾豆粕5%,玉米粉5%,糖蜜0.3%。
普通發酵飼料制備:將發酵培養基加入0.1%益生菌劑混合均勻,裝入發酵袋常溫發酵。每袋質量為1000 g。
酶化發酵飼料制備:按8U/g 干菌柄將FAE粗酶液加入到發酵培養基中,再加入0.1% 益生菌劑混合均勻,裝入發酵袋常溫發酵。每袋質量為1000 g。
1.4 指標測定與方法
1.4.1 飼料常規成分測定
粗蛋白質含量按GBT6432—1994《飼料中粗蛋白質測定方法》分析;中性洗滌纖維(neutraldetergentfiber,NDF)含量按GB/T20806—2006《飼料中中性洗滌纖維的測定》分析;酸性洗滌纖維(aciddetergentfiber,ADF)含量按NY/T1459—2007《飼料中酸性洗滌纖維的測定》分析;酸性洗滌木質素(aciddetergentlignin,ADL)含量按GB/T20805—2006《飼料中酸性洗滌木質素的測定》分析。
1.4.2 總氨基酸、乳酸含量測定
總氨基酸含量采用南京建成生物工程研究所的總氨基酸測定試劑盒,原理為銅離子(Cu2+)與氨基酸的顯色反應。乳酸含量采用南京建成生物工程研究所的乳酸測試盒測定,原理為乳酸脫氫酶的顯色反應。
1.4.3 總菌數、乳酸菌數測定
總菌數按GB/T13093—2006《飼料中細菌總數的測定》分析。乳酸菌數按GB4789.35—2010《食品安全國家標準食品微生物學檢驗乳酸菌檢驗》分析。
1.4.4 飼料發酵前后小分子肽變化測定
采用不連續凝膠電泳分析。上層丙烯酰胺5%,下層丙烯酰胺15%。
1.4.5 XOS和FA含量測定
XOS含量采用HPLC測定。HPX-87H色譜柱,示差折光檢測器。柱溫50℃,流動相5mmol/L的硫酸,流速0.4mL/min。FA含量采用HPLC法測定。色譜柱為ODS-C18柱,318nm檢測,柱溫30℃。流動相為甲醇∶水∶冰醋酸=30∶69.5∶0.5(V/V/V),流速為0.9mL/min。
1.4.6 飼料衛生指標檢測
飼料送至福建省分析檢測中心,按GB13078—2001《飼料衛生標準》分析。
1.4.7 肉雞雞肉品質
肉雞送至福建省分析檢測中心,按GB18406.3—2001《農產品安全質量無公害畜禽安全要求》分析。
1.5數據統計
分析數據采用SPSS19.0軟件的ANOVA進行方差分析,Duncan氏法進行多重比較,各組數據以平均值±標準差(mean±SD)表示。
2.1 發酵過程中影響飼料品質的因素變化 2.1.1 發酵過程中飼料重量變化 由表2可知,發酵過程中2個試驗組飼料重量都呈下降趨勢,第0天與第15天飼料重量差異顯著(P<0.05),隨著發酵進行,酶化發酵飼料重量減少比普通發酵飼料多,說明酶化發酵飼料代謝較徹底。發酵過程中飼料重量的減少是由于發酵基料水分的揮發、發酵過程中微生物的活動及酶促反應,使基料中的碳水化合物及蛋白質等大分子有機物分解成小分子物質而損失。 2.1.2 發酵過程中FA含量變化 由表3可知,在整個發酵過程中普通發酵飼料FA含量在0.23~0.40mg/g,變化范圍小;而酶化發酵飼料隨著發酵時間的延長,FA含量迅速上升,第10天FA含量達最高,為4.11mg/g,與第0天比,差異極顯著(P<0.01)。這是因為在酶化發酵飼料中加入了FAE,FAE與益生菌產生的木聚糖酶協同作用釋放出FA;而普通發酵飼料因沒有添加FAE,發酵過程中FA含量很低。 2.1.3 發酵過程中XOS含量變化 由表4可知,2個試驗組發酵開始,XOS含量都是隨著發酵時間增加而增加,但酶化發酵飼料XOS含量明顯比普通發酵飼料高,這是由于酶化發酵飼料添加的FAE與益生菌產生的木聚糖酶協同作用,提高了XOS的含量。發酵第10天,酶化發酵飼料其XOS含量達最高,為36.33mg/g,與第0天比,差異顯著(P<0.05);而普通發酵飼料第9天達最高,為20.43mg/g,與第0天比,差異顯著(P<0.05),隨后2個試驗組XOS含量都緩慢下降。 2.1.4 發酵過程中粗蛋白質含量變化 由表5可知,在整個發酵過程中,酶化發酵飼料的粗蛋白質含量高于普通發酵飼料。這是因為FAE的加入,增加飼料中XOS的量,而XOS有利于益生菌劑中乳酸菌、枯草芽孢桿菌、酵母菌的繁殖,從而提高了酶化發酵飼料中粗蛋白質的含量。發酵第5天,酶化發酵飼料及普通發酵飼料粗蛋白質含量都達最高,酶化發酵飼料粗蛋白質含量到達24.67%,與第0天比,差異極顯著(P<0.01);而普通發酵飼料最高為23.15%,與第0天比,差異顯著(P<0.05),隨后粗蛋白質含量都緩慢下降。試驗結果與胡瑞等研究酶菌聯合發酵對豆粕品質影響時,粗蛋白質含量變化結果一致。 2.1.5 發酵過程中總氨基酸含量變化 由表6可知,在整個發酵過程中,酶化發酵飼料總氨基酸含量都高于普通發酵飼料。發酵開始,2個試驗組中總氨基酸含量都隨著發酵時間增加而增加,第8天酶化發酵飼料及普通發酵飼料總氨基酸含量都達最高,分別為21.26、13.29mg/g,與第0天比,差異顯著或極顯著(P<0.05或P<0.01),隨后總氨基酸含量逐漸下降。與李龍等利用復合益生菌發酵飼料時,總氨基酸的變化趨勢一致。 2.1.6 發酵過程中總菌數變化 如表7可知,在發酵開始階段,由于飼料中營養豐富,2個試驗組總菌數都是呈上升趨勢,第10天酶化發酵飼料總菌數為22.00×10⁵個/g,與第0天比,差異顯著(P<0.05),第9天普通發酵飼料總菌數為10.00×105個/g,與第0天比,差異顯著(P<0.05);隨后,乳酸的生成使得飼料中pH降低,導致飼料中有些菌不適應環境而數量開始減少;發酵后期總菌數保持穩定,這與賈鵬輝等試驗結果相類似。酶化發酵飼料可能由于FAE作用,產生較多XOS,促進益生菌大量增殖而總菌數較普通發酵飼料多。 2.1.7 發酵過程中乳酸菌數變化 如表8可知,發酵開始,酶化發酵飼料及普通發酵飼料乳酸菌數都是呈上升趨勢,在第12天其菌數都達最大,其乳酸菌數分別為9.300×10⁵及3.200×10⁵個/g,與第0天比,差異都顯著(P<0.05)。之后由于乳酸菌處于衰亡期,2個試驗組的乳酸菌數開始下降并趨于平衡。 2.1.8 發酵過程中乳酸含量變化 從表9可知,整個發酵過程2個試驗組乳酸含量一直增加,在第10天,酶化發酵飼料乳酸含量達最大,為8.79g/kg,與第0天比,差異顯著(P<0.05);普通發酵飼料在第9天達最大,為7.14g/kg,與第0天比,差異顯著(P<0.05)。經過一定時間發酵后,乳酸菌增殖減緩,分泌的乳酸減少,乳酸含量維持在一定水平。乳酸含量增加會提高飼料的適口性,對動物的生長有積極的促進作用。 2.1.9 發酵過程中飼料pH變化 由表10可知,發酵第1天,2個試驗組pH基本一致,第3天后,由于乳酸菌的繁殖,導致pH下降,由于酶化發酵飼料乳酸菌較普通發酵飼料多,使得酶化發酵飼料的pH較低。發酵第15天,酶化發酵飼料的pH為4.25,普通發酵飼料的pH為4.32,與第0天比,差異都極顯著(P<0.01)。 2.1.10 發酵過程中ADF、ADL、NDF含量變化趨勢 由表11可知,酶化發酵飼料中ADL、ADF和NDF含量都比普通發酵飼料要低,且第10天2種發酵飼料ADL、ADF和NDF含量與第0天比都差異顯著或極顯著(P<0.05或P<0.01)。這是因為酶化發酵飼料中FAE與益生菌劑中微生物分泌的非淀粉降解酶協同降解發酵原料中的木質纖維,提高了木質纖維的降解率,因此酶化發酵飼料在降低飼料中抗營養因子的同時還能提高飼料中的營養成分。 2.1.11 發酵過程飼料中小分子肽變化 圖1可知,隨著發酵時間進行,普通發酵飼料與酶化發酵飼料中大分子蛋白質能夠降解為小分子肽,這是因為發酵飼料中有益菌的生長產生了更多的蛋白質水解酶,促進了小分子肽含量的增加。肽更容易被動物吸收,提高飼料品質。 2.1.12 飼料衛生指標檢測 經檢測,酶化發酵飼料的各項衛生指標符合GB13078—2001《飼料衛生標準》要求。 2.2 發酵飼料對肉雞生產性能的影響 2.2.1 發酵飼料對肉雞成活率的影響 將不同的發酵飼料以10%的比例添加到肉雞基礎飼糧中,肉雞飼養結果如表12。在飼喂全程中,飼糧中未添加任何的抗生素及其他的藥物,各組雞的死亡率均為0,死亡率差異不顯著(P>0.05),并未體現出添加發酵飼料抗病的優勢,這可能與飼養管理合理,場地衛生條件好有關。2結果與分析

以色列魏茨曼科學研究院科學家在新一期《自然》雜志發表文章稱:他們利用基于酶工作原理的計算機新算法設計出高效人工合成酶。這種新型酶不僅能催化天然蛋白質無法完成的化學反應,其效率更達到人工智能(AI)設計......
近日,湖北大學生命科學學院、省部共建生物催化與酶工程國家重點實驗室“化酶智造”團隊取得關鍵技術突破。該團隊創新方法,通過反向設計化學合成路線和建立突變體酶庫,實現甾體C7位的選擇性羥基化,大幅簡化合成......
羅漢果苷是一類來自藥用植物羅漢果(Siraitiagrosvenorii)的三萜皂苷類次生代謝產物,具有高甜度低熱量等特點,在食品添加劑領域具有廣闊的市場應用前景,其中羅漢果苷V(M5)和賽門苷I(S......
粗提的β-葡萄糖苷酶可采用硫酸銨沉淀或用乙醇、丙酮等有機溶劑沉淀等方法初步分離。β-葡萄糖苷酶的進一步純化,往往是根據具體情況,采用多種方法逐步分離。目前分離β-葡萄糖苷酶的方法較多,其中離子交換柱層......
酶是一種活性蛋白質。因此,一切對蛋白質活性有影響的因素都影響酶的活性。酶與底物作用的活性,受溫度、pH值、酶液濃度、底物濃度、酶的激活劑或抑制劑等許多因素的影響。(一)溫度大曲和麩曲的酶活性,在低溫干......
美國杜克大學領導的一個研究團隊開發出一種方法,可擴大CRISPR技術的覆蓋范圍。最初的CRISPR系統只能靶向人類基因組的12.5%,而新方法使CRISPR技術能夠準確靶向幾乎所有人類基因,使人們通過......
科學家們發現了一種名為PUCH的酶,它對于阻止寄生DNA序列在我們基因組中的傳播至關重要。這一發現可以讓我們深入了解我們的身體如何識別和對抗內部威脅(如基因組寄生蟲)和外部威脅(如病毒和細菌)。德國美......
在一項新的研究中,來自英國諾丁漢特倫特大學的研究人員確定了一種特定的酶如何在使前列腺癌變得更具侵襲性和更難治療方面發揮關鍵作用。他們發現這種在身體的許多細胞中含量豐富的稱為轉谷氨酰胺酶2(transg......
代謝工程和合成生物學工具有潛力馴化微生物細胞工廠,這些工廠能夠有效生產大量化學品和材料,包括大宗和特種化學品、生物燃料、聚合物和藥物。所需產物的微生物生產可以通過在微生物底盤細胞中異源表達特定酶或整個......
德國研究人員近日發現一種具有同化特性的原型亞硫酸鹽還原酶,通過這種特殊的酶,產甲烷微生物可將對其有害的亞硫酸鹽轉化成生長所需的硫化物。該研究提供了對進化的新見解,相關成果發表在《自然·化學生物學》雜志......