
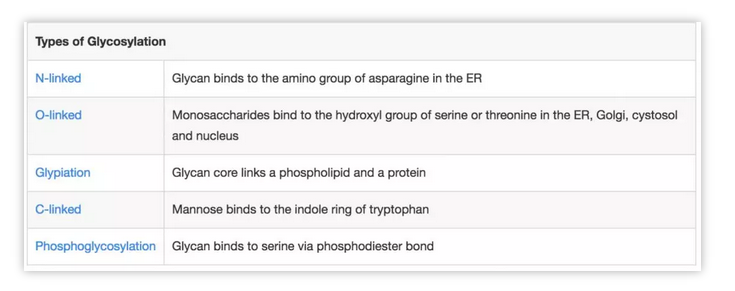
糖基化修飾是自然界最重要的蛋白質翻譯后修飾之一。根據糖基修飾與蛋白質的連接方式和修飾位點的不同,以及糖基是單糖或寡糖的不同,主要可分為如下幾類:
2013年來自中國和澳大利亞的兩個研究小組,在Nature發表文章,報道來自細菌的三型分泌系統效應蛋白NleB可以對死亡受體復合物中的接頭蛋白TRADD/FADD/RIPK1的死亡結構域(deathdomain,DD)進行精氨酸N-乙酰葡萄糖胺化修飾【1,2】。該修飾使得死亡結構域蛋白失去寡聚能力,從而在腸致病性大腸桿菌EPEC感染時,因為有NleB的存在,而抑制TNFR,FAS,TRAIL-R等多種死亡受體介導的炎癥反應和細胞死亡,利于其在宿主體內定殖。
2019年4月9日,來自北京生命科學研究所的邵峰課題組,在Molecular Cell發表題為Structural and Functional Insights into Host Death Domains Inactivation by the Bacterial Arginine GlcNAcyltransferase Effector的研究,研究人員解析了NleB單體(酶單體),NleB/FADD DD/UDP復合體(酶/底物/糖基配體三元復合體),發生精氨酸N-乙酰葡萄糖胺化修飾的RIPK DD和TRADD DD(修飾后的兩個蛋白底物),發現NleB的催化機理與以往報道的來自細菌的多個O-連接糖基轉移酶(Lgt1,a-Toxin,TcdA/B,PaTox等)不同,是一種“翻轉型”糖基轉移酶(inverting glycosyltransferase),揭示精氨酸N-乙酰葡萄糖胺化修飾的酶學機理,酶和底物識別機制以及其酶學活性在動物感染模型中的作用。

死亡結構域最著名的的生化性質是通過自體或異體相互作用,形成寡聚體來傳遞信號,所以對其晶體結構的研究是結構生物學中的熱點和難點。當死亡結構域蛋白發生精氨酸N-乙酰葡萄糖胺化修飾后會失去寡聚能力。在原核或真核共表達甚至病原菌感染體系中,NleB對TRADD,FADD和RIPK1的死亡結構域修飾比例可以達到百分之百。研究人員解析了修飾后的TRADDDD和RIPK1DD蛋白的晶體結構,可以看到N乙酰葡萄糖胺(GlcNAc)以b-構型連接在死亡結構域蛋白對應的精氨酸上。
在NleB/FADDDD/UDP復合體(酶/底物/糖基配體三元復合體)中,研究人員發現NleB形成一個C型凹溝,球狀的死亡結構域蛋白正好嵌入其中,復合物中的NleB與單體的NleB相比,C型凹溝變小,使其與死亡結構域蛋白更加嵌合。
人類基因組中有大于30個死亡結構域蛋白,其中12個含有保守精氨酸(NleB的修飾位點),研究人員利用課題組前期制備的特異性識別精氨酸N-乙酰葡萄糖胺化修飾的抗體【3】,發現在原核體系中,NleB可以修飾TNFR1,FAS,DR3等受體,而不能修飾DR4和DR5。他們將酶和底物結合區域的重要氨基酸進行突變分析,發現DR5的Lys369變成可被修飾底物中的氨基酸Asp,DR5就可以被NleB修飾,與之相對應,NleB中可能與DR5的Asp369突變體相互作用的位點Lys289和Lys292如果變成Asp289和Glu292,則NleB也獲得的修飾DR5的能力,進一步說明酶和底物精細的識別機制調控了NleB對死亡結構域蛋白特異的修飾。
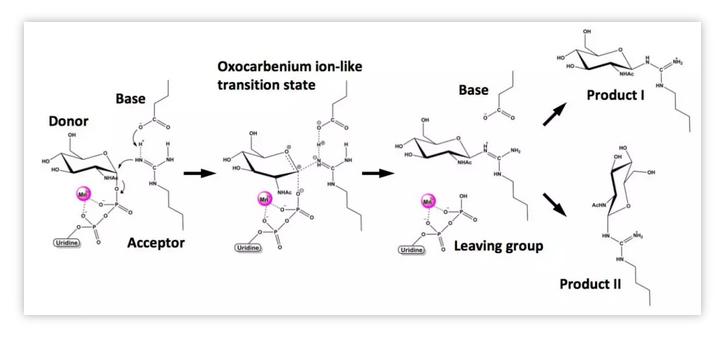
FADD-DD的117位精氨酸,插入并穩定在NleB蛋白內一個由5個以上氨基酸組成的很窄的裂口中,NleB的Glu253與Arg117形成氫鍵,作為“堿”活化被修飾的精氨酸,發生如圖所示的電子轉移,最后形成b-構型的糖苷鍵,研究人員也在晶體結構和NMR核磁數據中進一步證實了該糖基化修飾的構型,揭示NleB是一種“翻轉型”糖基轉移酶。這與目前發現的來源于細菌的能對絲氨酸/蘇氨酸發生O-Glucose或O-GlcNAc修飾的毒素蛋白所采用的“保留型”機制都不同。2017-2018年陸續有文章報道,從NleB的同源蛋白SseK1或SseK3的單體結構或與SseKs-UDP復合物結構中,推測SseK及NleB家族,可能與以往的毒素一樣也是“保留型”糖基轉移酶,而本文的研究人員通過解析多個被修飾后的底物的晶體結構、核磁結構,解析酶和底物復合體結構,發現NleB家族是“翻轉型”糖基轉移酶。
最后,研究人員發現NleB可以抑制FADD與上游FAS,DR4,DR5和RIPK1的結合,也可以抑制TRADD與上游TNFR1,及下游RIPK1和FADD的結合,由于NleB可以有效的修飾多個死亡受體相關蛋白的死亡結構域,它是一個多效的死亡受體信號通路抑制劑。
參考文獻
1. Li,S., Li, S., Zhang, L., Yao, Q., Li, L., Dong, N., Rong, J., Gao, W., Ding, X.,Sun, L., Chen, X., Chen, S., Shao, F., 2013. Pathogen blocks host deathreceptor signalling by arginine GlcNAcylation of death domains. Nature 501,242–246. doi:10.1038/nature12436
2. Pearson,J.S., Giogha, C., Ong, S.Y., Kennedy, C.L., Kelly, M., Robinson, K.S., Lung,T.W.F., Mansell, A., Riedmaier, P., Oates, C.V.L., Zaid, A., Mühlen, S.,Crepin, V.F., Marches, O., Ang, C.-S., Williamson, N.A., O’Reilly, L.A.,Bankovacki, A., Nachbur, U., Infusini, G., Webb, A.I., Silke, J., Strasser, A.,Frankel, G., Hartland, E.L., 2013. A type III effector antagonizes deathreceptor signalling during bacterial gut infection. Nature 501, 247–251.doi:10.1038/nature12524
3. Pan,M., Li, S., Li, X., Shao, F., Liu, L., Hu, H.-G., 2014. Synthesis of andSpecific Antibody Generation for Glycopeptides with Arginine N-GlcNAcylation. Angew. Chem. Int. Ed. 53, 14517–14521. doi:10.1002/anie.201407824
中國科學院動物研究所研究員趙方慶團隊開發基于納米孔RNA直接測序技術與深度學習策略的RNA修飾圖譜解析算法ORCA。相關研究發表于《自然-通訊》。基于深度學習的RNA修飾系統識別與注釋模型 ......
已上市的蛋白藥物中,治療性糖蛋白藥物數量眾多,糖基化是最常見的蛋白翻譯后修飾。2020版《中國藥典》第一增補版中,正式發布9405糖蛋白的糖基化分析指導原則。賽默飛能為糖基化分析提供業內最全方案,可根......
近日,我所生物技術研究部生物分離與界面分子機制研究組(1824組)卿光焱研究員團隊受邀發表了面向蛋白磷酸化和糖基化分析的新型化學工具的綜述文章,系統總結了研究團隊在多磷酸化富集、磷酸化動態監測及糖基化......
“WestlakeProteomicsSeries”(WeOmics)系列研討會由西湖大學Guomics實驗室,西湖實驗室iMarker實驗室,CN-HUPO,TheProteomicNavigato......
美國斯克里普斯研究所和加州大學洛杉磯分校的化學家開發出一種強大的新方法,可對廣泛用于構建藥物分子的雙環氮雜芳烴進行精確、靈活修飾。9日發表在《自然》雜志上的這一具有里程碑意義的成就,將為科學家提供更易......
糖基化是生物體中最普遍的蛋白質翻譯后修飾之一,與許多重大疾病的發生和發展密切相關。糖肽是聚糖與多肽結合形成的綴合物,其生物學功能是由聚糖結構和多肽序列的協同作用來實現的。由于糖肽的復雜性和難以獲得性,......
糖基化是一種重要且廣泛存在的蛋白質翻譯后修飾方式,對人體維持正常的生理功能發揮舉足輕重的作用,一直是修飾組學研究的焦點之一。在實際應用中,多種疾病診斷的生物標志物和蛋白質藥物是糖蛋白,大量糖蛋白的特殊......
近日,我所分子模擬與設計研究組(1106組)李國輝研究員團隊與清華大學藥學院尹航教授團隊合作,揭示了ZDHHC18介導的cGAS棕櫚酰化修飾抑制先天免疫的分子機制。環狀GMP-AMP合酶(cGAS)是......
蛋白質糖基化修飾是生物體內最重要的翻譯后修飾之一,發生在細胞50%-70%的蛋白上。病毒囊膜蛋白的糖基化修飾具有廣泛的功能,包括調控蛋白質穩定性、病毒的趨向性、和保護潛在的抗原表位免受免疫監視等。深入......
近日,國際食品期刊《FoodChemistry》(中科院SCI期刊分區大類學科1區top,2020年影響因子為6.306)在線發表了題為《大豆分離蛋白水解物及其糖基化產物對酸誘導大豆分離蛋白凝膠流變和......